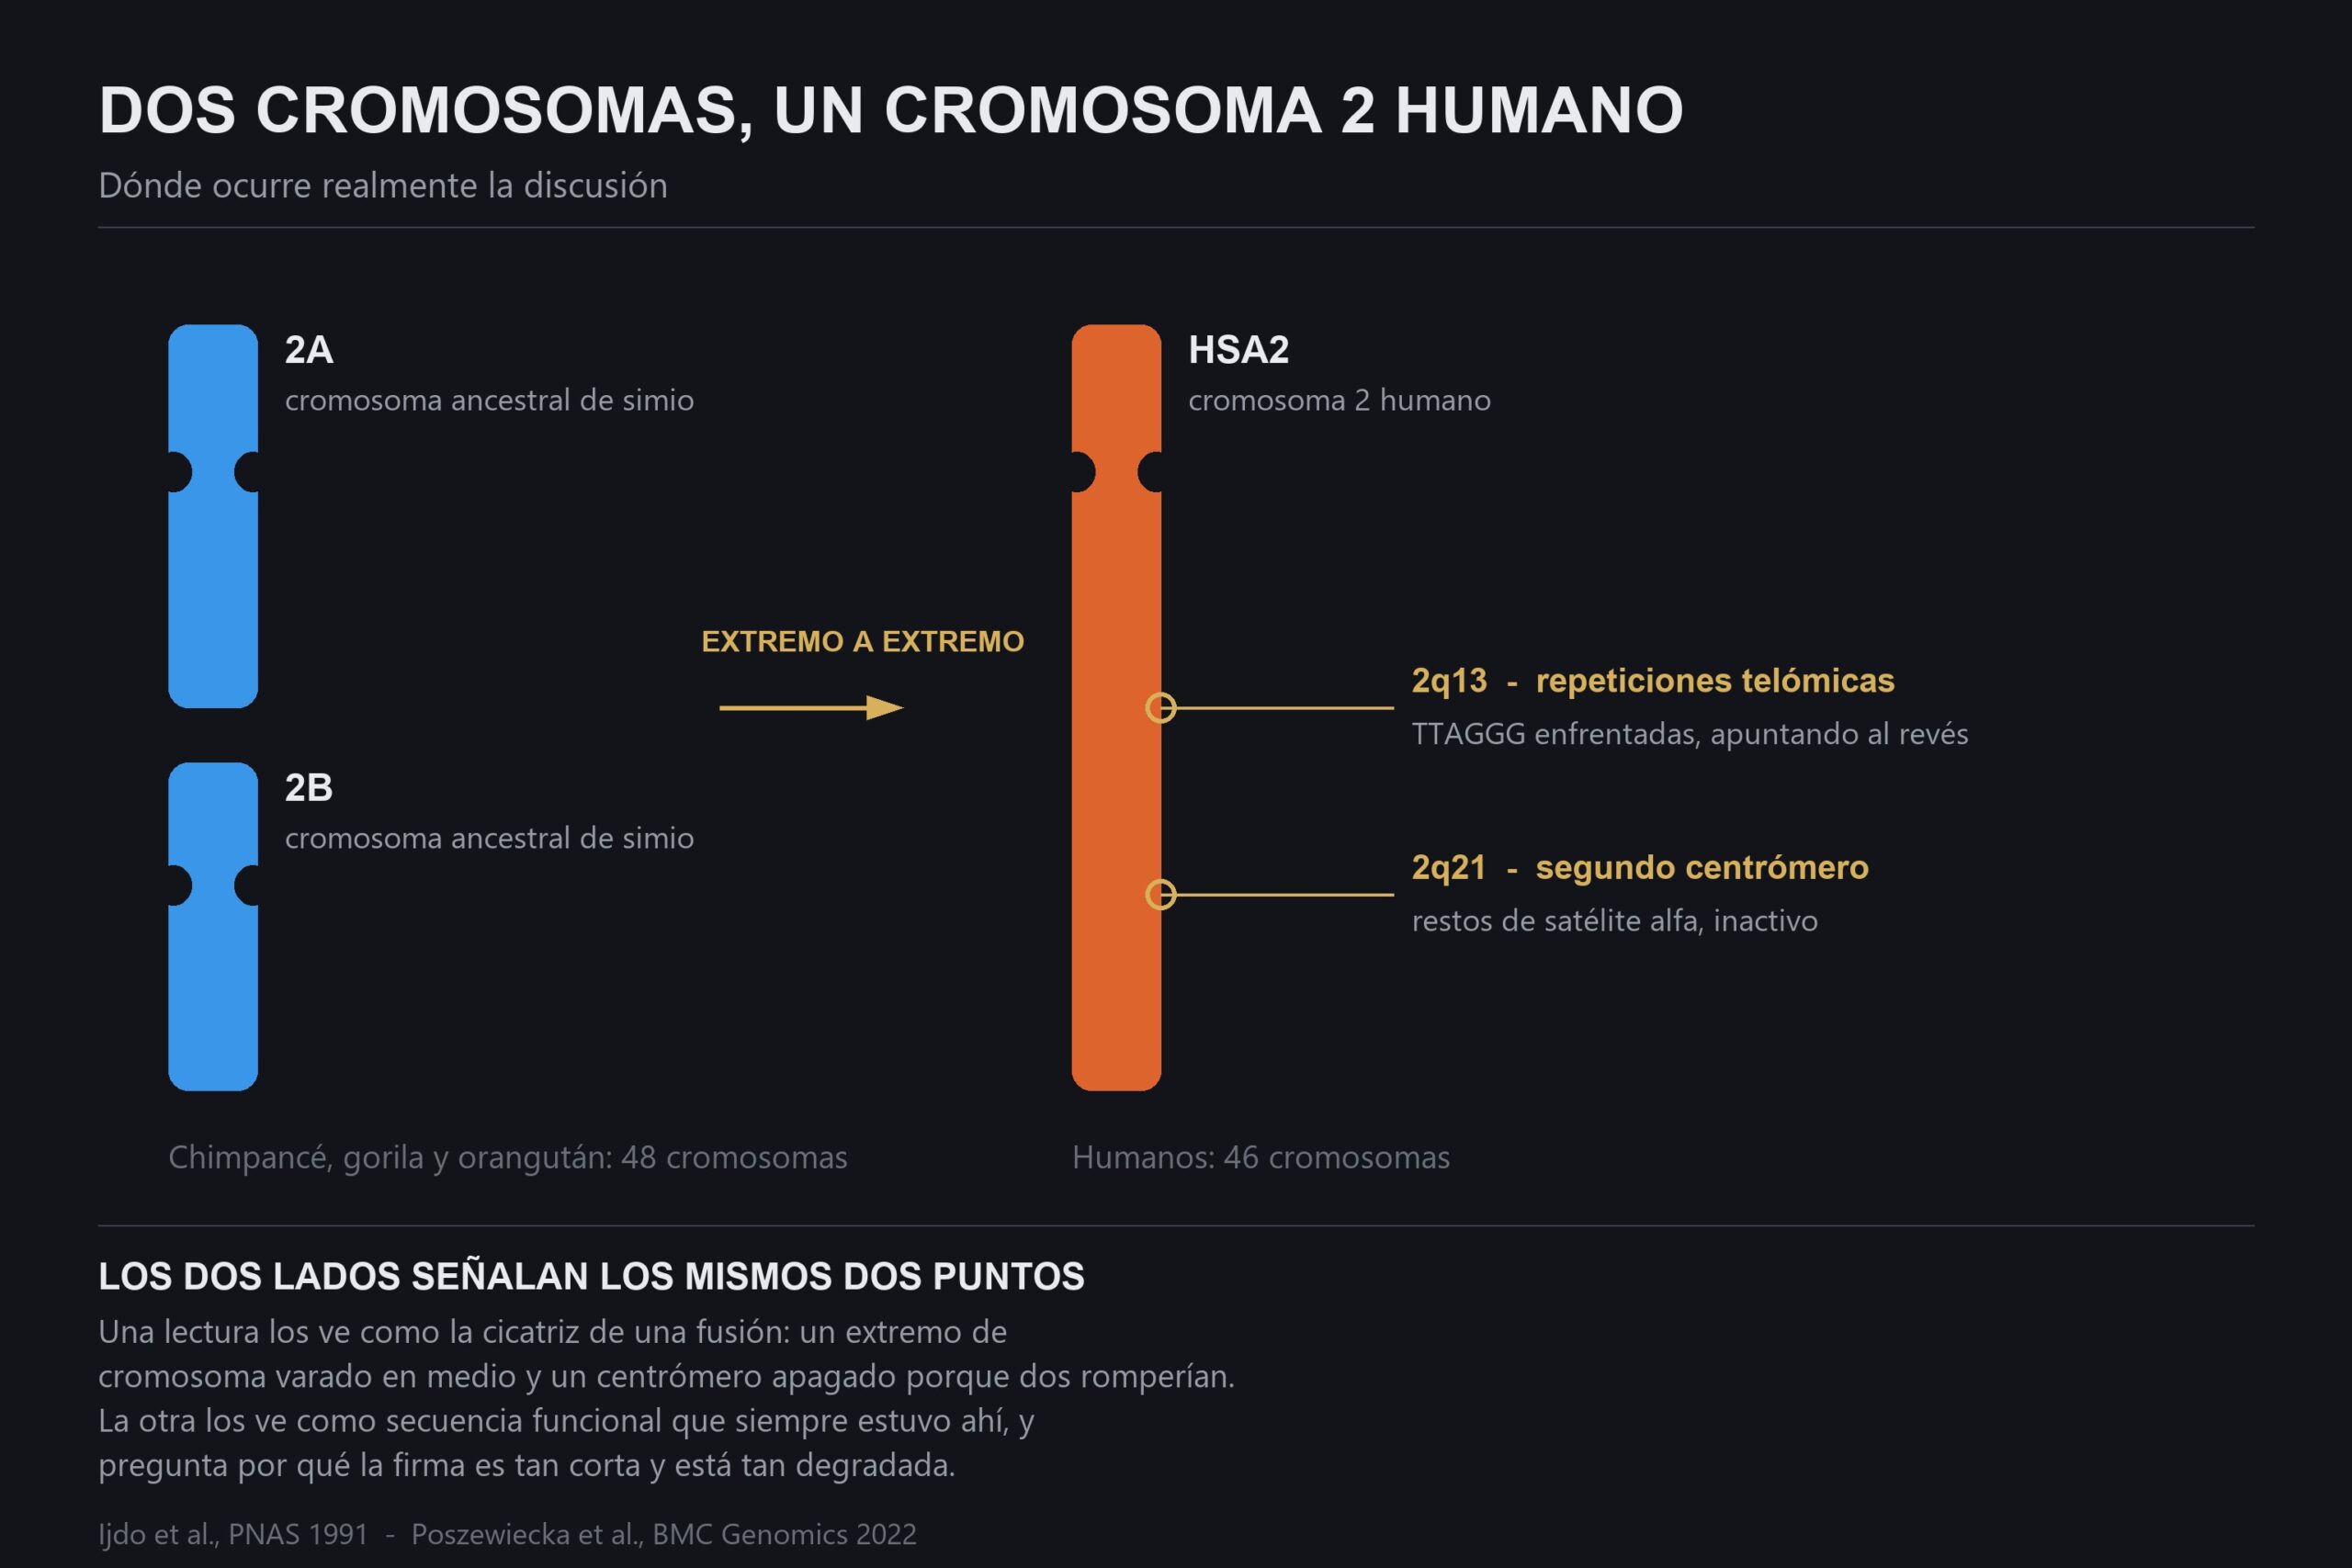
Usted tiene 46 cromosomas. Todos los chimpancés, gorilas y orangutanes vivos tienen 48.
No es una diferencia menor. El número de cromosomas es de lo más conservado que tiene una especie, porque equivocarse en eso suele significar no tener descendencia. Y sin embargo, en algún punto del linaje que nos produjo, dos cromosomas se convirtieron en uno y la cuenta bajó un par. Esa es la razón por la que tenemos 46 cromosomas y ellos 48, y el suceso se conoce como la fusión del cromosoma 2 humano.
El lugar donde se supone que ocurrió no está escondido. Está en una dirección conocida del segundo cromosoma más grande que usted posee, y los dos bandos de una de las discusiones más largas de la biología señalan exactamente el mismo punto. Discrepan por completo sobre qué es.
Lo que hace que merezca volver sobre ello ahora es un número. En 2022 se volvió a datar la fusión, y la respuesta salió mucho más reciente de lo que da a entender la versión de los manuales. En 2023, un equipo distinto, trabajando en un problema completamente diferente, encontró que la población humana se había desplomado hasta unos mil adultos reproductores casi en el mismo momento.
Qué es la fusión del cromosoma 2 humano
Es la propuesta de que el cromosoma 2 humano se formó cuando dos cromosomas ancestrales más pequeños se unieron extremo con extremo, reduciendo la cuenta humana de 48 a 46. Los dos siguen existiendo por separado en el chimpancé, donde se llaman 2A y 2B.
La propuesta la publicaron J. W. Ijdo y sus colegas en PNAS en 1991, con un título que dice exactamente lo que creían haber encontrado: Origin of human chromosome 2: an ancestral telomere-telomere fusion.
La cuenta que nadie discute
Empecemos por lo que no está en duda, porque es más de lo que la gente espera.
| Pares de cromosomas | Total | |
|---|---|---|
| Humano | 23 | 46 |
| Chimpancé | 24 | 48 |
| Bonobo | 24 | 48 |
| Gorila | 24 | 48 |
| Orangután | 24 | 48 |
El cromosoma 2 humano mide además, según cualquier medición que se haya hecho, aproximadamente lo mismo que los cromosomas 2A y 2B del chimpancé puestos uno a continuación del otro. Su patrón de bandas — la firma rayada que muestra un cromosoma al microscopio después de teñirlo — coincide con los dos colocados punta contra punta. El orden de los genes también coincide.
De eso no discute nadie. La discusión es sobre qué produjo la coincidencia.
El caso a favor de que sea una fusión
Dos rasgos del cromosoma 2 son todo el caso, y los dos son lo bastante concretos como para comprobarlos.
Telómeros en mitad del cromosoma. Los telómeros son los capuchones de los extremos de un cromosoma, construidos con la secuencia TTAGGG repetida una y otra vez. Su sitio es el extremo. En la banda 2q13, más o menos en el centro del cromosoma, hay un tramo de repetición telomérica, y está dispuesto de frente: una serie apuntando hacia un lado y otra apuntando de vuelta contra ella. Ese es el patrón que se obtendría al soldar dos extremos de cromosoma, y no el que se obtendría de ninguna otra manera propuesta.
Un segundo centrómero, apagado. El centrómero es el punto por el que se tira de un cromosoma cuando la célula se divide. Un cromosoma necesita exactamente uno. Dos son un problema serio: la maquinaria celular tira desde ambos y el cromosoma puede romperse. En 2q21.3–q22.1 hay un bloque de ADN satélite alfa — la repetición con la que se construyen los centrómeros — situado en el lugar justo para ser lo que queda del centrómero de 2B, y está inactivo.
Juntos, la lectura es una cicatriz: un extremo de cromosoma antiguo varado en medio y un centrómero de repuesto apagado porque conservar dos habría sido letal.
Hay además una pieza más discreta, más difícil de rebatir porque nadie la estaba buscando. Cerca de los telómeros reales, un proceso llamado conversión génica sesgada deja una huella estadística: un exceso local de sustituciones que favorecen las bases G y C. Esa misma huella aparece alrededor de 2q13, que es lo que cabría esperar si ese tramo estuvo en el extremo de un cromosoma y se comportó como tal durante mucho tiempo.
El caso a favor de que no sea una fusión
La objeción técnica más sostenida viene de Jeffrey Tomkins, genetista que escribe desde una posición creacionista, y conviene exponerla bien y no en la forma que adopta cuando alguien se dispone a descartarla.
La firma es demasiado corta. Una fusión de dos extremos de cromosoma debería enterrar en la unión del orden de diez mil bases de repetición telomérica. Lo que hay en realidad en 2q13 son unas 800 bases. El argumento de Tomkins es que el relato dominante exige que la mayor parte de la evidencia se haya borrado, y que una explicación que necesita que falte la evidencia es más débil de lo que parece.
Las repeticiones están muy degradadas. De las unidades de repetición del sitio, Tomkins cuenta menos de la mitad como TTAGGG o TTGGGG perfectas. Una secuencia degradada hasta ese punto en cinco o seis millones de años, sostiene, sería indistinguible del azar, y un patrón que solo se ve cuando ya se ha decidido qué se busca no es un patrón.
El sitio está dentro de un gen que funciona. La región 2q13 cae en el primer intrón de un gen llamado DDX11L2, y Tomkins mostró que la región funciona como sitio de unión de factores de transcripción, uniendo once factores distintos, entre ellos la ARN polimerasa II. Su conclusión: extremos de cromosoma chocando no producen ADN regulador funcional, así que la lectura más simple es que esa secuencia siempre estuvo destinada a estar ahí.
El centrómero de repuesto no encaja. El satélite alfa de 2q21 es mucho más corto que un centrómero funcional, está dentro de otro gen que se expresa y — señala Tomkins — no se parece mucho a la secuencia centromérica del chimpancé, que es lo que uno querría si se hubiera heredado de un antepasado común.
La respuesta desde los subtelómeros
El punto sobre DDX11L es el más fuerte de los cuatro, y tiene una respuesta concreta que conviene conocer porque le da la vuelta al argumento.
DDX11L no es un gen normal. Es una familia, y en 2009 un equipo que publicó en BMC Genomics cartografió dónde viven sus miembros: dieciocho sitios subteloméricos distintos repartidos por el genoma humano. Son secuencias que quedan justo por dentro de los extremos cromosómicos, en casi todos los cromosomas, y el argumento del artículo es que la extraordinaria inestabilidad de esas regiones es lo que genera la familia en primer lugar.
De modo que la presencia de un gen DDX11L indica que un tramo de ADN tiene el carácter de un extremo de cromosoma. En todos los demás cromosomas, los genes DDX11L están en los extremos, que es donde están los extremos. En el cromosoma 2, uno de ellos está en el medio.
Eso no hace desaparecer la objeción: quien defienda la lectura del diseño puede sostener que la familia se distribuye así porque esas regiones necesitan esa clase de secuencia. Pero sí significa que la presencia del gen en 2q13 es exactamente lo que predice el relato de la fusión, y no un problema para él.
La respuesta del otro lado
Esa respuesta tiene a su vez respuesta, y conviene seguir el intercambio hasta el final en lugar de pararlo donde da la casualidad de que está hablando uno de los dos.
La lectura del diseño no concede que un gen DDX11L marque un antiguo extremo de cromosoma. Su argumento es el contrario: son regiones que necesitan una clase concreta de secuencia, y la familia se reparte por ellas por la misma razón por la que aparecen herramientas parecidas allá donde hay que hacer un trabajo parecido. En esa lectura, el gen de 2q13 está trabajando, no señalando una cicatriz, y decir que sus parientes están cerca de los extremos describe el patrón sin explicarlo.
Hay además una pregunta que el relato de la fusión no ha respondido con limpieza. Si 2q13 es un telómero antiguo, ha tenido, con la datación más reciente, unos novecientos mil años para degradarse, y no los cinco o seis millones que suponían las estimaciones anteriores. La queja de Tomkins era que el sitio está demasiado degradado para la edad que se le atribuye. Acercar la fecha hace esa degradación más difícil de explicar, no más fácil, porque ha habido menos tiempo para que ocurra.
No es un punto menor, y nadie ha publicado una respuesta cuantitativa.
La fecha que se movió
Aquí es donde el asunto dejó de ser una entrada cerrada de manual.
Durante mucho tiempo se supuso que la fusión había ocurrido cerca de la separación del linaje del chimpancé, hace seis o siete millones de años. En 2022, Poszewiecka, Gogolewski, Stankiewicz y Gambin publicaron una nueva datación en BMC Genomics, usando como reloj la velocidad a la que se acumula esa huella de conversión génica sesgada.
Su respuesta: hace unos 900.000 años, con un intervalo de confianza del 95 % de 400.000 a 1,5 millones. Estimaciones anteriores llegaban hasta los 4,5 millones.
Tómese eso en serio un momento y el cuadro cambia. Hace seis millones de años es antes de que existiera Homo. Hace novecientos mil años es la mitad de su historia. Con esta datación, Homo erectus — una especie que fabricaba herramientas, usaba el fuego y salió de África — habría tenido 48 cromosomas.
El intervalo es amplio, y se trata de un método aplicado a una señal. Pero es el intento más cuidadoso hecho hasta ahora, y sitúa el suceso dentro de nuestro propio género en lugar de en la raíz del árbol.
Por qué una fusión necesita una población muy pequeña
Esta es la parte que casi nunca se explica, y es la que más importa.
Una fusión ocurre en un solo individuo. Ese individuo pasa a tener 47 cromosomas y tiene que reproducirse con la población de 48 que lo rodea. Sus hijos heredan un juego impar, y cuando esos hijos fabrican óvulos o espermatozoides los cromosomas tienen que emparejarse, con una pareja de menos.
El resultado está bien documentado en humanos actuales, porque lo mismo ocurre en portadores de lo que se llama una traslocación robertsoniana, en la que dos cromosomas se fusionan. Los portadores están sanos. Lo que tienen es fertilidad reducida, y una tasa mayor de abortos espontáneos y de embriones con un número equivocado de cromosomas.
Así que una fusión nueva normalmente se selecciona en contra. En una población grande y bien mezclada desaparece. Para que se extienda a todos los miembros de una especie, esa especie tiene que ser lo bastante pequeña como para que el azar le gane a la selección: una población tan reducida que una variante levemente perjudicial pueda fijarse por deriva, sencillamente porque no hay individuos suficientes para que la selección funcione.
Dicho de otro modo: la fusión que lleva cada célula humana es en sí misma un argumento de que la población humana pasó una vez por algo muy estrecho.
El número que llegó desde otra parte
En 2023, un equipo dirigido por Wangjie Hu publicó en Science una reconstrucción del tamaño de la población humana antigua, hecha a partir de los genomas de 3.154 personas vivas con un método que llamaron FitCoal. No trabajaban sobre el cromosoma 2. Preguntaban cuánta gente había habido.
Lo que encontraron fue un desplome.
| Cuándo | hace entre unos 930.000 y 813.000 años |
|---|---|
| Población reproductora | unos 1.280 individuos |
| Duración | unos 117.000 años |
| Proporción de la población anterior | 1,3 % |
| Diversidad genética perdida | 65,85 % |
Durante unos cien mil años, según su reconstrucción, toda la población humana ancestral tenía el tamaño de un pueblo, y siguió así durante más tiempo del que lleva existiendo nuestra propia especie.
Ahora ponga los dos hallazgos uno al lado del otro. Una fusión cromosómica que requiere una población diminuta para extenderse, datada hace unos 900.000 años. Una población reducida a unos 1.280 adultos reproductores entre hace 930.000 y 813.000 años, encontrada por otro equipo con otro método y otra pregunta.
Pueden ser el mismo suceso visto desde dos direcciones. Pueden no serlo: la fecha de la fusión arrastra un intervalo amplio, la reconstrucción del cuello de botella ha sido discutida por otros grupos, y dos números que caen cerca son justo la clase de coincidencia que se sobreinterpreta. Pero la convergencia es real, y no es algo que ninguno de los dos equipos estuviera intentando producir.
Qué tiene esto que ver con el Génesis
La razón por la que esta discusión nunca ha sido solo biológica es que aterriza directamente sobre una afirmación de un texto.
Génesis 2 describe a la humanidad empezando con un hombre y una mujer hechos directamente, no con una población que poco a poco se volvió humana. Todas las genealogías posteriores se construyen sobre eso, y es la lectura desde la que trabaja este sitio.
La objeción que se le ha planteado desde la genética ha sido siempre la misma: que nuestro genoma lleva demasiada variación para venir de dos personas, y que no cabe la diversidad de los humanos vivos por una puerta tan estrecha.
El hallazgo del cuello de botella no disuelve esa objeción, y no conviene venderlo como si lo hiciera. 1.280 no es dos. Lo que hace es mover el terreno sobre el que se apoya, de dos maneras que conviene enunciar con precisión.
Establece que el genoma sí registra una casi extinción — que la idea de una humanidad pasando por una puerta radicalmente estrecha no es una importación religiosa a los datos, sino algo que los datos produjeron por su cuenta. Y muestra que el número se puede recuperar, lo que convierte la pregunta «cuánto de estrecho» en algo medible y no en cuestión de gusto.
Quien toma el Génesis al pie de la letra lo trata como movimiento en su dirección, y observa que todas las revisiones de la cifra han ido en el mismo sentido: hacia abajo. Quien no lo lee así responde que un suelo de unos mil sigue estando a tres órdenes de magnitud de dos, y que no se ha demostrado ningún estrechamiento adicional. Las dos son afirmaciones justas sobre el mismo resultado, y el resultado es lo bastante reciente como para que ninguno de los dos lados deba hablar como si el asunto estuviera cerrado.
La misma forma aparece en otros puntos de este registro. Las edades del Génesis dibujan una curva y no una dispersión, que es un patrón real y que por sí solo no dice qué lo produjo. El cromosoma Y en el relato del nacimiento virginal plantea un problema mecánico genuino que la genética sabe enunciar con precisión y no sabe resolver. El programa de cría de Jacob en Génesis 30 describe la herencia recesiva funcionando correctamente, siglos antes de que nadie tuviera una palabra para ella. En cada caso hay algo real en los datos y una discusión sobre qué significa, y conviene mantener las dos cosas separadas.
Qué sigue realmente sin resolver
Ser honesto con este asunto implica nombrar lo que no tiene ninguno de los dos bandos.
Nadie lo ha visto ocurrir en un primate. Se observan fusiones cromosómicas en otros mamíferos, y las traslocaciones robertsonianas ocurren hoy en humanos. Una fusión fijándose en toda una población de simios nunca se ha observado, solo inferido.
La fecha es un método. La cifra de 900.000 años descansa en un único reloj aplicado a una única señal, con un intervalo que va de 400.000 a 1,5 millones de años. Es el mejor número disponible, no un número medido.
El cuello de botella está discutido. La reconstrucción de Hu y sus colegas ha sido cuestionada por otros genetistas de poblaciones, que sostienen que el método puede producir un cuello de botella aparente a partir de la estructura poblacional y no de un desplome real. Ese intercambio sigue abierto.
Los ensamblajes de 2025 volvieron el sitio más complicado, no menos. Se publicaron genomas completos de telómero a telómero para chimpancé, bonobo, gorila y las dos especies de orangután, y un equipo que publicó en Cell Genomics los usó para mirar directamente la región de la fusión. Lo que encontraron no fue una costura limpia, sino un mosaico de segmentos duplicados cuyos parientes más próximos están en linajes de simio distintos, un patrón que se llama clasificación incompleta de linajes. La región es más antigua y más desordenada que una simple unión.
Preguntas frecuentes
¿Cuántos cromosomas tiene el ser humano?
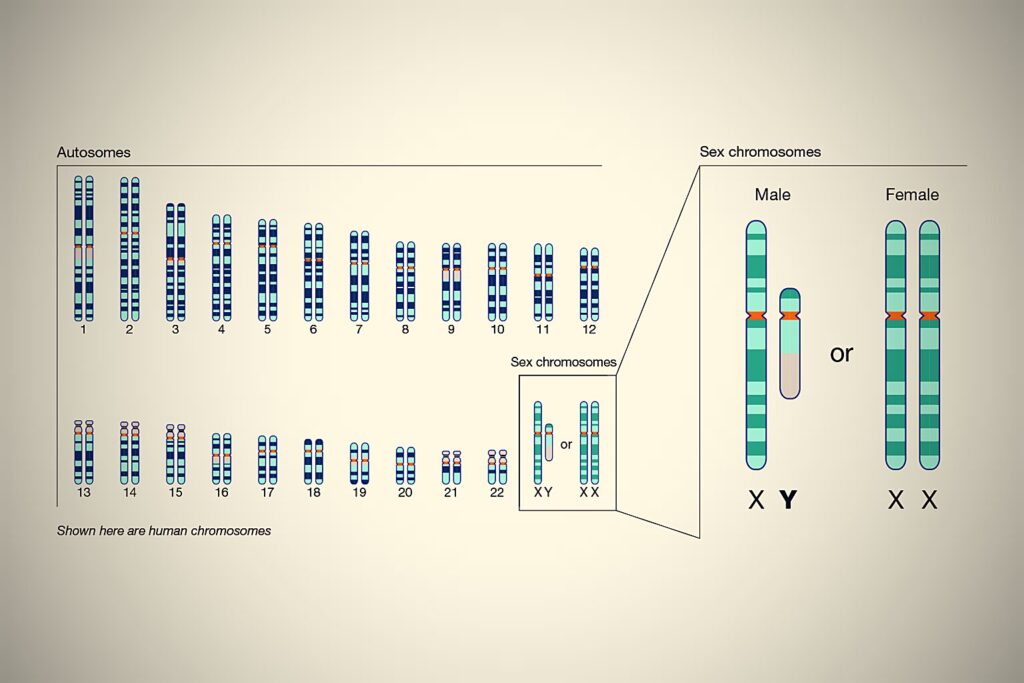
Cuarenta y seis: 23 pares. El chimpancé, el bonobo, el gorila y el orangután tienen 48, es decir 24 pares. Esa diferencia de un par es el punto de partida de toda la discusión.
¿Por qué tenemos 46 cromosomas y los chimpancés 48?
Porque el cromosoma 2 humano se corresponde con dos cromosomas separados del chimpancé, 2A y 2B. Esa correspondencia no la discute nadie: la longitud, el patrón de bandas y el orden de los genes coinciden cuando se ponen los dos uno a continuación del otro. Lo que se discute es si una fusión produjo la coincidencia.
¿Qué evidencia hay de la fusión del cromosoma 2?
Dos cosas, las dos en direcciones conocidas. Repeticiones teloméricas TTAGGG enfrentadas en la banda 2q13, en mitad de un cromosoma donde no deberían estar los extremos cromosómicos; y un bloque de ADN satélite alfa inactivo en 2q21, colocado como los restos de un segundo centrómero.
¿Cuál es el argumento en contra de la fusión?
Sobre todo que la firma es corta y está degradada — unas 800 bases donde una fusión reciente debería dejar unas diez mil, con menos de la mitad de las repeticiones intactas — y que el sitio está dentro de un gen que funciona, DDX11L2, que une once factores de transcripción. Jeffrey Tomkins sostiene que el ADN regulador funcional no es lo que producen unos extremos de cromosoma al chocar.
¿Cuándo ocurrió la fusión del cromosoma 2?
La estimación más cuidadosa, de Poszewiecka y sus colegas en BMC Genomics en 2022, es de hace unos 900.000 años, con un intervalo de confianza del 95 % de 400.000 a 1,5 millones. Es mucho más reciente que la cifra de seis o siete millones que da a entender el relato de manual, y situaría el suceso dentro del género Homo.
¿Demuestra la fusión del cromosoma 2 la evolución humana?
Por sí sola no, y las dos afirmaciones se mezclan tan a menudo que conviene separarlas. Si hubo una fusión es una pregunta sobre dos tramos de ADN dentro de la línea humana. De dónde viene esa línea es otra pregunta, y una fusión dentro de una línea no dice nada sobre su origen, en ningún sentido.
Lo que realmente se discute es el parecido: el cromosoma 2 humano se parece a los cromosomas 2A y 2B del chimpancé puestos uno tras otro. En la lectura del diseño, eso es lo que cabe esperar de un solo diseñador trabajando con un solo patrón, igual que el resto del genoma se parece al suyo sin que ese parecido tenga que significar herencia. Quienes lo leen como descendencia común toman ese mismo parecido por herencia. Ninguno de los dos llega ahí solo con la fusión.
¿Cómo de pequeña era la población humana hace 900.000 años?
Un estudio de 2023 en Science dirigido por Wangjie Hu estimó unos 1.280 individuos reproductores durante unos 117.000 años, entre hace unos 930.000 y 813.000 años: alrededor del 1,3 % de la población anterior, con casi dos tercios de la diversidad genética perdida. Otros genetistas de poblaciones han cuestionado el hallazgo.
¿Pudo la fusión ocurrir en una sola persona?
Tuvo que ser así. Una fusión ocurre en un único individuo, cuyos descendientes llevan entonces un número impar de cromosomas y, según lo que se ve hoy en las traslocaciones robertsonianas humanas, fertilidad reducida. Por eso, para que una fusión se extienda por toda una especie, la población tuvo que ser muy pequeña en ese momento.
Qué lo resolvería
Dos cosas moverían esto, y ninguna está fuera de alcance.
Ver una fusión fijándose en una población silvestre. Existen razas cromosómicas en mamíferos vivos: los ratones domésticos, en particular, llevan juegos de fusiones distintos en valles distintos. Seguir una hasta la fijación, con los tamaños poblacionales medidos y no inferidos, convertiría el mecanismo central de modelo en observación.
Zanjar el cuello de botella. La cifra de 1.280 es una reconstrucción, y la objeción es concreta: la estructura poblacional puede imitar un desplome. Esa es una pregunta metodológica con respuesta metodológica, y los grupos de ambos lados siguen publicando.
Hasta entonces, lo que hay sobre la mesa es esto. Cada célula de su cuerpo lleva un cromosoma que parece, en dos direcciones distintas, dos cromosomas unidos. Lo que fuera que lo produjo se extendió a todos los humanos vivos, lo que significa que pasó por una puerta lo bastante estrecha como para que el azar le ganara a la selección. Y una línea de trabajo distinta, con otra pregunta, dice que la puerta tenía unas mil personas de ancho.
El Génesis dice que fueron dos. La distancia entre esos números es la discusión, y se ha ido acortando, que no es lo mismo que decir que se ha cerrado.
Seguir leyendo
- La Sábana Santa de Turín: un negativo que nadie encargó — El polvo aspirado del lienzo en 1978 ya ha sido secuenciado, y el resultado se contó como prueba de que la Sábana vino…
- El ingeniero divino: la biología de Adán y Eva — Formado y después insuflado: dos operaciones separadas. Qué acierta químicamente el polvo de la tierra, por qué tselá…
- ADN basura: un archivo que nadie curó — Una cebolla tiene cinco veces más ADN que usted. Ese solo hecho es la pregunta más difícil de la genómica, y la que…